Rezeptoren und Signaltransduktion
Arzneistoffe wirken über Zielstrukturen: Rezeptoren, Enzyme, Transporter und Ionenkanäle. Kern der Seite sind die vier Rezeptorfamilien mit ihren Signalwegen und Zeitskalen, die G-Protein-Subtypen mit Second Messengern und die Anpassung der Rezeptoren an Dauerstimulation oder Dauerblockade.
Dein roter Faden
- Zielstrukturen: Arzneistoffe binden an Rezeptoren, Enzyme, Transporter oder Ionenkanäle; Selektivität ist relativ und dosisabhängig.
- Vier Rezeptorfamilien: Ionenkanal (Millisekunden), GPCR (Sekunden bis Minuten), enzymgekoppelter Rezeptor (Minuten bis Stunden), Kernrezeptor (Stunden bis Tage); je mehr Schritte, desto langsamer.
- GPCR-Zyklus: Agonist → GDP/GTP-Austausch an Gα → Dissoziation von Gα-GTP und Gβγ → Effektor; die GTPase von Gα schaltet ab.
- G-Proteine: Gs steigert cAMP, Gi senkt cAMP und öffnet K⁺-Kanäle, Gq aktiviert Phospholipase C mit IP₃ (Ca²⁺) und DAG (PKC).
- Enzymgekoppelt: RTK dimerisieren und autophosphorylieren, Zytokinrezeptoren nutzen JAK-STAT, natriuretische Peptide die Rezeptor-Guanylatcyclase.
- Kernrezeptoren: lipophile Liganden steuern als Transkriptionsfaktoren Gene, daher verzögerter und den Plasmaspiegel überdauernder Effekt.
- Regulation: GRK und β-Arrestin desensitisieren, Internalisierung folgt; Agonisten führen zur Down-, Antagonisten zur Up-Regulation mit Rebound beim Absetzen.
Zielstrukturen im Überblick
Arzneistoffe wirken, indem sie an körpereigene Makromoleküle binden und deren Funktion verändern. Diese Bindungspartner heißen Zielstrukturen (Targets). Ein Rezeptor im engeren Sinn ist ein Protein, das einen endogenen Botenstoff spezifisch bindet und das Signal in eine zelluläre Antwort übersetzt. Die Begriffe Wirkstoff und Wirkung setzen die Grundbegriffe voraus.
- Rezeptoren: größte Gruppe, allein die G-Protein-gekoppelten Rezeptoren sind Target für rund ein Drittel der Arzneistoffe.
- Enzyme: zweitgrößte Gruppe, meist gehemmt.
- Transporter und Ionenkanäle: Blockade oder Modulation des Transports über die Membran.
- Selektivität: bevorzugte Bindung an ein Target. Sie ist relativ und dosisabhängig: Bei hoher Konzentration werden Nachbartargets mitgetroffen. Spezifität (ausschließlich ein Target) erreicht praktisch kein Arzneistoff.
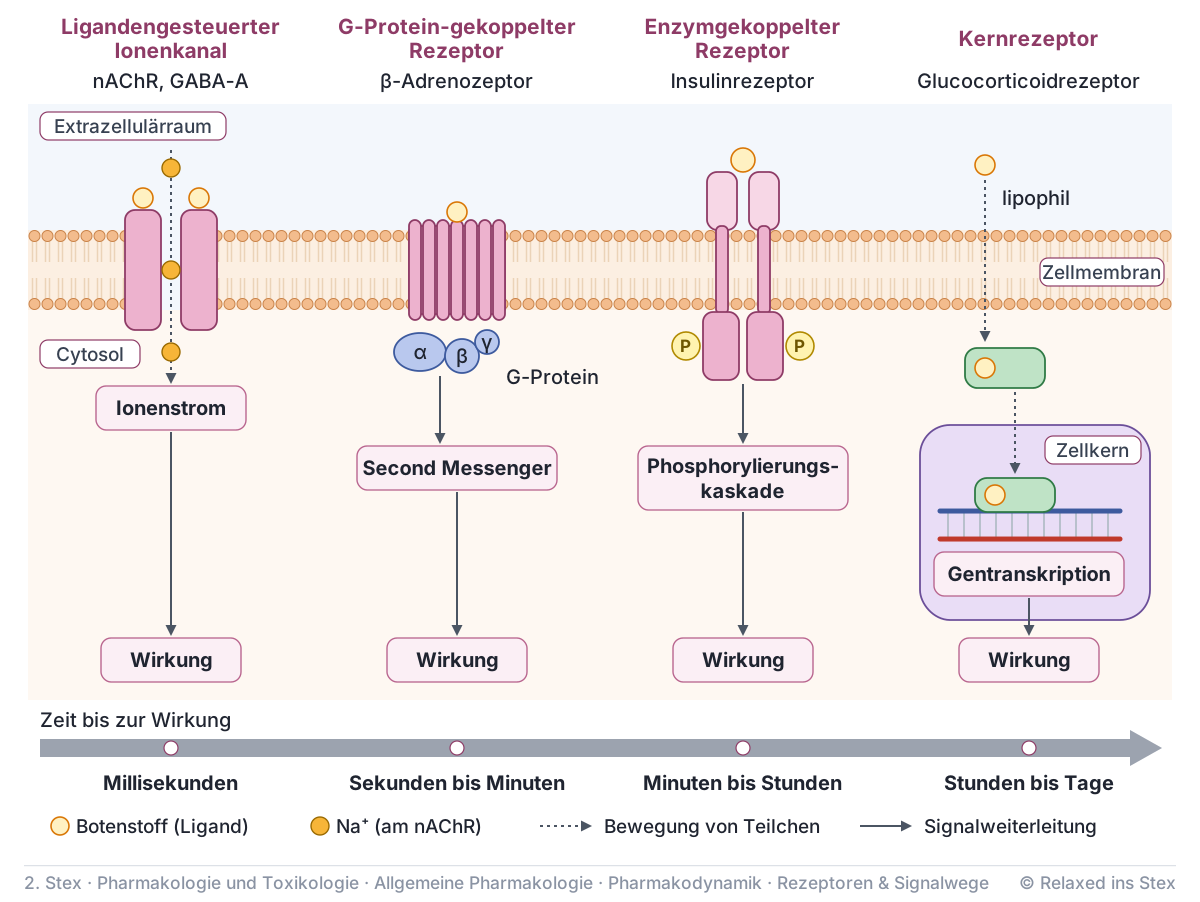
Die vier Rezeptorfamilien unterscheiden sich vor allem darin, wie viele Schritte zwischen Bindung und Wirkung liegen:
| Familie | Signal | Zeitskala | Beispiel |
|---|---|---|---|
| Ligandengesteuerter Ionenkanal | Ionenstrom | Millisekunden | nAChR, GABA-A |
| G-Protein-gekoppelter Rezeptor | G-Protein → Second Messenger | Sekunden bis Minuten | β-Adrenozeptor |
| Enzymgekoppelter Rezeptor | Phosphorylierungskaskade | Minuten bis Stunden | Insulinrezeptor |
| Kernrezeptor | Gentranskription | Stunden bis Tage | Glucocorticoidrezeptor |
Ligandengesteuerte Ionenkanäle
Beim ligandengesteuerten Ionenkanal liegen Bindungsstelle und Pore in einem Protein: Bindet der Ligand, öffnet sich der Kanal ohne Zwischenschritt. Das macht ihn zum schnellsten Rezeptortyp und typisch für die synaptische Übertragung. Die Cys-Loop-Familie besteht aus fünf Untereinheiten um eine zentrale Pore.
- Nicotinischer Acetylcholinrezeptor (nAChR): Kationenkanal, Na⁺-Einstrom → Depolarisation; an motorischer Endplatte und vegetativen Ganglien, Angriff der Muskelrelaxanzien.
- GABA-A-Rezeptor: Cl⁻-Kanal → Hyperpolarisation, also Hemmung; Benzodiazepine binden allosterisch an der α/γ-Grenzfläche und erhöhen die Öffnungsfrequenz, aber nur in Gegenwart von GABA.
- Weitere: 5-HT₃-, Glycin-, NMDA- und AMPA-Rezeptor.
G-Protein-gekoppelte Rezeptoren
G-Protein-gekoppelte Rezeptoren (GPCR) durchspannen die Membran mit sieben Transmembranhelices und koppeln intrazellulär an ein heterotrimeres G-Protein (Gα, Gβγ). Der Aktivierungszyklus:
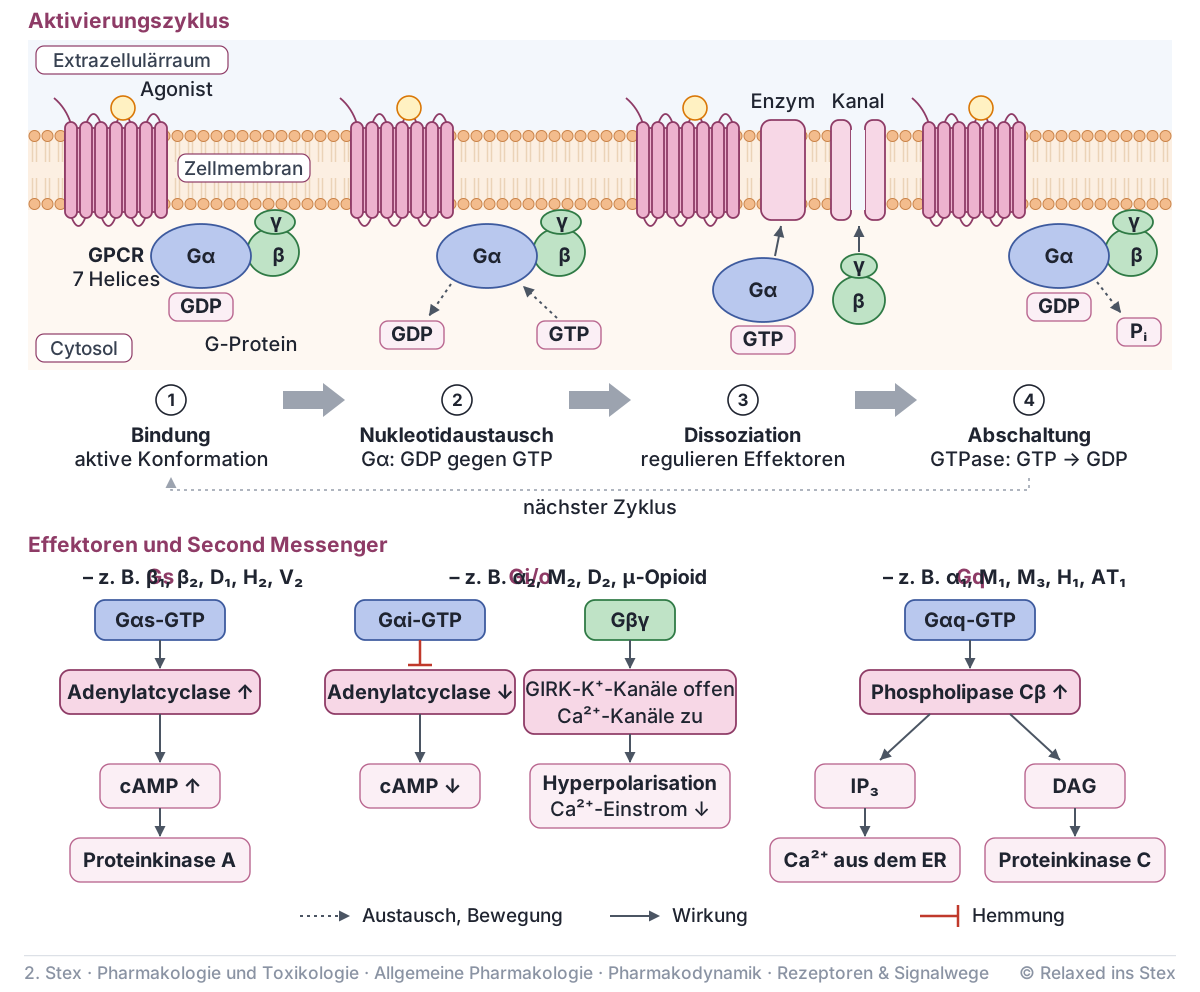
- Bindung: Der Agonist stabilisiert die aktive Rezeptorkonformation.
- Nukleotidaustausch: Gα gibt GDP ab und bindet GTP.
- Dissoziation: Gα-GTP und Gβγ trennen sich und regulieren Effektoren (Enzyme, Ionenkanäle).
- Abschaltung: Die intrinsische GTPase von Gα hydrolysiert GTP zu GDP, das Trimer bildet sich neu.
Die Effektorenzyme bilden Second Messenger: kleine intrazelluläre Botenstoffe, die das Signal von der Membran ins Zellinnere tragen.
| G-Protein | Effektor | Second Messenger → Folge | Beispielrezeptoren |
|---|---|---|---|
| Gs | Adenylatcyclase ↑ | cAMP ↑ → Proteinkinase A | β₁, β₂, D₁, H₂, V₂ |
| Gi/o | Adenylatcyclase ↓; Gβγ öffnet GIRK-K⁺-Kanäle, schließt Ca²⁺-Kanäle | cAMP ↓, Hyperpolarisation | α₂, M₂, D₂, μ-Opioid |
| Gq | Phospholipase Cβ ↑ | IP₃ → Ca²⁺ aus dem ER; DAG → Proteinkinase C | α₁, M₁, M₃, H₁, AT₁ |
Signalverstärkung: Ein aktiver Rezeptor aktiviert nacheinander viele G-Proteine, jede Adenylatcyclase bildet viele cAMP-Moleküle. Phosphodiesterasen bauen cAMP wieder ab. Die Rezeptorsubtypen des vegetativen Systems stehen beim adrenergen System.
Enzymgekoppelte Rezeptoren
Enzymgekoppelte Rezeptoren haben meist eine Transmembranhelix; ihre intrazelluläre Domäne ist selbst ein Enzym oder bindet eines. Sie steuern über Phosphorylierungskaskaden vor allem Wachstum, Differenzierung und Stoffwechsel.
- Rezeptortyrosinkinasen (RTK): Ligand → Dimerisierung → gegenseitige Autophosphorylierung an Tyrosinresten → Bindung von Adapterproteinen mit SH2-Domäne → Ras-MAPK- und PI3K-Akt-Weg. Beispiele: Insulinrezeptor (präformiertes Dimer), EGFR, HER2, VEGFR; Target der Tyrosinkinase-Inhibitoren.
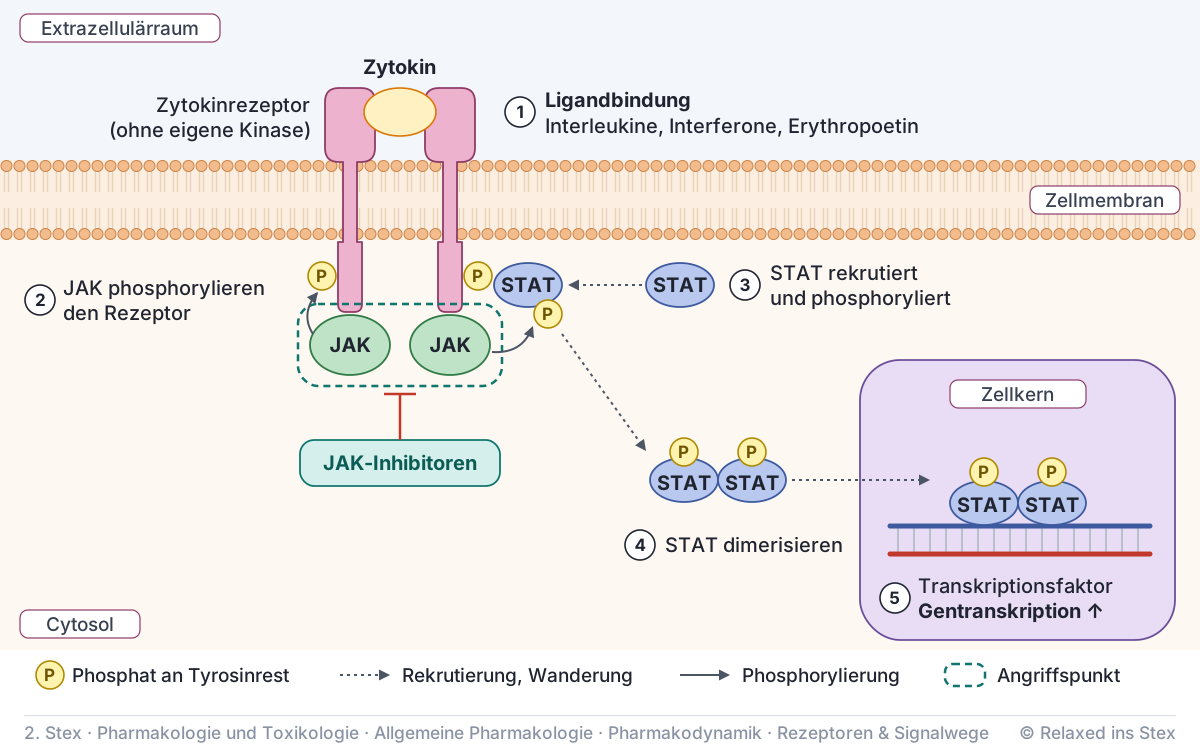
- JAK-STAT-Signalweg: Zytokinrezeptoren haben keine eigene Kinase. Assoziierte Janus-Kinasen (JAK) phosphorylieren nach Ligandbindung den Rezeptor, rekrutierte STAT-Proteine werden phosphoryliert, dimerisieren und wirken im Kern als Transkriptionsfaktoren. Liganden: Interleukine, Interferone, Erythropoetin; Target der JAK-Inhibitoren.
- Rezeptor-Guanylatcyclase: ANP, BNP → cGMP ↑ → Proteinkinase G → Vasodilatation, Natriurese. Abzugrenzen ist die lösliche Guanylatcyclase als NO-Rezeptor im Zytosol (sGC-Stimulatoren).
Intrazelluläre Rezeptoren
Kernrezeptoren sind ligandenaktivierte Transkriptionsfaktoren. Ihre Liganden sind lipophil und passieren die Membran: Steroidhormone, Schilddrüsenhormone, Calcitriol, Retinoide und PPAR-Agonisten wie die Glitazone.
- Bindung: Der Ligand bindet an die Ligandenbindungsdomäne, Chaperone (Hitzeschockproteine) lösen sich ab.
- Dimerisierung: Das Rezeptordimer gelangt in den Zellkern.
- DNA-Bindung: Zinkfinger binden an Hormone Response Elements.
- Transkription: Koaktivatoren oder Korepressoren verändern die Expression der Zielgene.
Die Wirkung setzt verzögert ein, weil erst mRNA und Protein gebildet oder vorhandene Proteine abgebaut werden müssen. Aus demselben Grund überdauert sie den Plasmaspiegel deutlich. Details zur Steroidwirkung bei der Hormonwirkung.
Regulation von Rezeptoren
Rezeptoren passen ihre Empfindlichkeit an die Stärke der Stimulation an, am besten untersucht bei GPCR:
- Desensitisierung (Sekunden bis Minuten): G-Protein-gekoppelte Rezeptorkinasen (GRK) phosphorylieren den agonistbesetzten Rezeptor, β-Arrestin bindet und entkoppelt ihn vom G-Protein (homolog). PKA und PKC phosphorylieren auch unbesetzte Rezeptoren (heterolog).
- Internalisierung (Minuten): Arrestin vermittelt die clathrinabhängige Endozytose → Recycling an die Membran oder lysosomaler Abbau.
- Down-Regulation (Stunden bis Tage): Dauerstimulation durch Agonisten senkt die Rezeptorzahl, weil Abbau ↑ und Synthese ↓.
- Up-Regulation: Dauerblockade durch Antagonisten erhöht die Rezeptorzahl → Überempfindlichkeit für den endogenen Agonisten.
Klinisch zeigt sich das als Toleranz, die bei Agonisten und Antagonisten behandelt wird.
Antwort anzeigen
Unter Dauerblockade werden β-Adrenozeptoren hochreguliert. Fällt der Betablocker plötzlich weg, trifft Noradrenalin auf mehr freie Rezeptoren: Tachykardie, Blutdruckanstieg und bei KHK Angina pectoris (Rebound). Deshalb wird ausgeschlichen.
Pharmakologische Angriffspunkte
Neben Rezeptoren sind Enzyme, Transporter und spannungsgesteuerte Ionenkanäle wichtige Zielstrukturen. Zunehmend greifen Arzneistoffe auch unterhalb des Rezeptors in die Signalkette ein.
| Zielstruktur | Beispiel | Arzneistoffklasse |
|---|---|---|
| Enzym | ACE, COX, HMG-CoA-Reduktase | ACE-Hemmer, NSAR, Statine |
| Transporter | SERT, H⁺/K⁺-ATPase, NKCC2 | SSRI, PPI, Schleifendiuretika |
| Spannungsgesteuerter Ionenkanal | Na⁺-Kanal, L-Typ-Ca²⁺-Kanal | Lokalanästhetika, Calciumkanalblocker |
| Signalweg unterhalb des Rezeptors | Tyrosinkinasen, JAK, PDE-5 (cGMP-Abbau) | Tyrosinkinase-Inhibitoren, JAK-Inhibitoren, PDE-5-Hemmer |
Teste dich
Aussage 1
Die intrinsische GTPase-Aktivität der Gα-Untereinheit beendet das G-Protein-Signal.
Gα hydrolysiert GTP zu GDP und lagert sich wieder mit Gβγ zum inaktiven Trimer zusammen.
Warum?
Aussage 3
Eine Dauerbehandlung mit einem Rezeptorantagonisten führt zur Down-Regulation der Rezeptoren.
Dauerblockade führt zur Up-Regulation; Down-Regulation entsteht durch Dauerstimulation mit Agonisten.
Aussage 4
Gi-gekoppelte Rezeptoren hemmen die Adenylatcyclase und öffnen über Gβγ K⁺-Kanäle.
Gi senkt cAMP, Gβγ öffnet GIRK-Kanäle, die Zelle hyperpolarisiert, z. B. am M₂- oder μ-Opioidrezeptor.
Reihenfolge
Aussage 6
Benzodiazepine öffnen den GABA-A-Rezeptor auch ohne GABA direkt.
Benzodiazepine binden allosterisch an der α/γ-Grenzfläche und erhöhen die Öffnungsfrequenz nur in Gegenwart von GABA.
Aussage 7
IP₃ aktiviert die Proteinkinase C, während DAG Ca²⁺ aus dem endoplasmatischen Retikulum freisetzt.
Vertauscht: IP₃ setzt Ca²⁺ aus dem ER frei, DAG aktiviert die Proteinkinase C.
Aussage 8
Zytokinrezeptoren besitzen keine eigene Kinasedomäne, sondern nutzen assoziierte Janus-Kinasen.
JAK phosphorylieren nach Ligandbindung den Rezeptor und die STAT-Proteine, die im Kern als Transkriptionsfaktoren wirken.
Zuordnen
Prüferin fragt
Fehler entdeckt oder eine Idee? Wir verbessern die Inhalte laufend. Melde es uns gerne über dieses Formular ❤️
Teile der Inhalte wurden mithilfe von KI-Systemen erstellt und werden fortlaufend redaktionell geprüft. Trotz Sorgfalt können Fehler enthalten sein. Wichtige Informationen bitte anhand offizieller Quellen prüfen. Relaxed ins Stex ist ein unabhängiges Angebot und steht in keiner Kooperation mit dem IMPP. Das Angebot ist weder vom IMPP autorisiert noch mit diesem verbunden.